El lecho capilar es una red de vasos sanguíneos microscópicos donde se produce prácticamente todo el intercambio entre la sangre y los tejidos. Su capacidad de intercambio depende de la estructura extremadamente delgada de la pared capilar, del tipo de capilar, de los gradientes de concentración y del equilibrio entre la presión hidrostática y la presión osmótica.
Los tres mecanismos principales de intercambio capilar son la difusión, la transcitosis y el flujo masivo. La difusión permite el movimiento de la mayoría de las moléculas pequeñas, la transcitosis transporta macromoléculas dentro de vesículas a través de las células endoteliales y el flujo masivo desplaza agua y solutos disueltos como consecuencia de las diferencias de presión.
Qué es un lecho capilar
Los capilares son los vasos sanguíneos más pequeños y numerosos del cuerpo humano, especializados en el intercambio entre la sangre y los tejidos circundantes. Miden aproximadamente entre 5 y 10 micrómetros de diámetro, una dimensión suficiente para que los glóbulos rojos, de unos 7,5 micrómetros de ancho, pasen en fila india y a menudo tengan que doblarse para avanzar por estos conductos estrechos.
La cantidad estimada de capilares en un adulto oscila entre 20.000 millones y 100.000 millones, lo que refleja su enorme abundancia. Como los capilares forman redes densas entre las células del cuerpo, ninguna célula se encuentra lejos de su fuente de suministro.
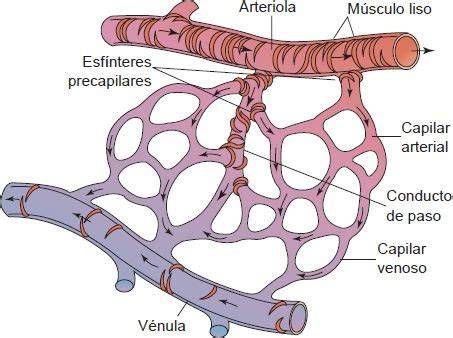
Los capilares no funcionan de forma aislada, sino que forman redes extensas conocidas como lechos capilares. Un lecho capilar suele estar formado por numerosos capilares interconectados, normalmente entre 10 y 100. La sangre llega desde una arteriola, pasa por una arteriola terminal, atraviesa la red capilar y sale hacia una vénula poscapilar.
El flujo sanguíneo que recorre esta red recibe el nombre de microcirculación. La secuencia correcta de la microcirculación es: arteriola → arteriola terminal → lecho capilar → vénula poscapilar.
Estructura de la pared capilar
La pared de cada capilar es muy fina y está formada por una sola capa de células endoteliales apoyadas sobre una delicada membrana basal. Esta barrera delgada facilita el movimiento de moléculas pequeñas mediante difusión simple o facilitada.
La pared capilar está constituida únicamente por la túnica íntima, formada por el endotelio y la membrana basal circundante. Los capilares carecen de músculo liso, por lo que no pueden modificar directamente su diámetro mediante vasoconstricción o vasodilatación.
Aunque los capilares no pueden contraerse ni dilatarse por sí mismos, las arteriolas sí poseen músculo liso y pueden regular la cantidad de sangre que entra en los lechos capilares. La vasoconstricción arteriolar puede disminuir el flujo hacia un lecho capilar y dirigir la sangre hacia otras zonas donde sea más necesaria.
Tipos de capilares y capacidad de intercambio
Existen tres tipos principales de capilares: continuos, fenestrados y sinusoidales. Se diferencian por la continuidad del endotelio, el tamaño de las aberturas, la estructura de la membrana basal y el grado de permeabilidad.
| Tipo de capilar | Características | Capacidad de intercambio | Localización habitual |
|---|---|---|---|
| Continuo | Endotelio continuo, uniones estrechas, pequeñas hendiduras intercelulares y membrana basal intacta | Menor permeabilidad; permite el paso de gases, nutrientes, agua y moléculas pequeñas | Piel, cerebro, pulmones y músculo |
| Fenestrado | Poros pequeños llamados fenestraciones | Permeabilidad moderada; facilita la filtración, la secreción y la absorción | Riñones, glándulas endocrinas e intestino delgado |
| Sinusoidal | Endotelio discontinuo, grandes aberturas y membrana basal incompleta | Mayor permeabilidad; permite el paso de macromoléculas e incluso células | Hígado, bazo y médula ósea |
Capilares continuos
Los capilares continuos son el tipo más común y menos permeable. Sus células endoteliales están estrechamente unidas, aunque existen pequeñas hendiduras intercelulares que permiten cierta difusión de líquidos y sustancias pequeñas.
Se encuentran ampliamente distribuidos en tejidos como la piel, el cerebro, los pulmones y el músculo. Su estructura limita el paso de moléculas grandes, pero es suficiente para el intercambio de los nutrientes y productos de desecho necesarios.
Los capilares continuos no serían los más adecuados en tejidos donde se necesita intercambiar moléculas relativamente grandes y realizar una difusión rápida de moléculas pequeñas, debido a su naturaleza restrictiva.
Capilares fenestrados
Los capilares fenestrados contienen pequeños poros llamados fenestraciones en las células endoteliales. Estas aberturas aumentan la permeabilidad y permiten un intercambio mayor que el de los capilares continuos, aunque todavía limitan el paso de moléculas de gran tamaño.
Son importantes en órganos que requieren filtración, secreción o absorción activa, como los riñones, las glándulas endocrinas y el intestino delgado. Las fenestraciones permiten un intercambio más rápido y abundante de sustancias, mientras que las uniones estrechas conservan cierto control sobre la permeabilidad.
Capilares sinusoidales
Los capilares sinusoidales son los menos frecuentes y los más permeables. Su endotelio discontinuo presenta grandes aberturas, y la membrana basal también es discontinua o incompleta.
Esta estructura permite el paso de moléculas grandes e incluso de células completas. Los capilares sinusoidales son esenciales en órganos que requieren un intercambio amplio, como el hígado, el bazo y la médula ósea.
En la médula ósea, por ejemplo, las nuevas células sanguíneas pueden entrar en la circulación a través de estas grandes aberturas, lo que demuestra la función particular de los capilares sinusoidales en la hematopoyesis.
Mecanismos del intercambio capilar
La función principal del sistema cardiovascular es llevar gases, nutrientes y otras sustancias a las células del cuerpo y retirar los productos de desecho. El término intercambio capilar describe el movimiento de sustancias entre la sangre y los tejidos.
Este intercambio se produce mediante tres mecanismos: difusión, transcitosis y flujo masivo.
Difusión
La difusión es el mecanismo más frecuente del intercambio capilar y permite el movimiento de la mayoría de las moléculas pequeñas entre la sangre y los tejidos. Las sustancias se desplazan siempre desde las zonas donde su concentración es mayor hacia las zonas donde su concentración es menor.
Las moléculas pequeñas solubles en lípidos, como el oxígeno, el dióxido de carbono y algunos lípidos, atraviesan directamente las membranas de las células endoteliales. Las sustancias pequeñas solubles en agua, como la glucosa, los aminoácidos y los iones, utilizan proteínas de canal específicas para atravesar el endotelio mediante difusión facilitada.
Algunas moléculas también pueden pasar por los pequeños espacios existentes entre las células endoteliales, llamados hendiduras intercelulares. Los capilares fenestrados contienen poros que permiten el paso de moléculas de tamaño intermedio, mientras que los capilares sinusoidales tienen grandes aberturas que permiten incluso el paso de proteínas plasmáticas.
Cuando una sustancia está más concentrada en la sangre, como ocurre normalmente con el oxígeno y la glucosa, tiende a difundirse hacia los tejidos. En cambio, las sustancias producidas por las células cercanas, como el dióxido de carbono y otros residuos metabólicos, se difunden hacia la sangre.
La dirección y la velocidad de la difusión dependen de los gradientes de concentración entre la sangre y el líquido intersticial. Cuanto mayor sea la diferencia de concentración, mayor será la tendencia al movimiento de la sustancia.
Transcitosis
La transcitosis, también llamada transporte vesicular, es el segundo mecanismo que facilita el intercambio capilar. Permite que algunas moléculas grandes e insolubles en agua atraviesen las células endoteliales dentro de vesículas.
Con frecuencia, estas moléculas se unen primero a receptores específicos situados en la superficie de la célula endotelial. Esta unión desencadena una endocitosis mediada por receptores: la célula forma una pequeña vesícula alrededor de la molécula y la incorpora a su interior.
La vesícula atraviesa el interior de la célula y libera la molécula en el lado opuesto mediante exocitosis. De este modo, las macromoléculas importantes pueden desplazarse desde la sangre hacia los tejidos o en sentido contrario, aunque sean demasiado grandes para pasar por poros o canales.
Las vesículas pueden fusionarse con otras, mezclar su contenido o dirigirse hacia tejidos específicos según las necesidades del organismo. Aunque la transcitosis es una vía normal y útil para transportar moléculas grandes, algunos microorganismos dañinos también pueden aprovechar este sistema para atravesar barreras epiteliales.
Los investigadores farmacéuticos están estudiando la posibilidad de utilizar la transcitosis para transportar medicamentos a través de la barrera hematoencefálica. Como esta barrera impide que la mayoría de los fármacos llegue al cerebro, el uso del sistema de transporte del propio organismo podría ayudar a administrar tratamientos, especialmente moléculas grandes como los anticuerpos.
Flujo masivo
El flujo masivo es el movimiento impulsado por la presión de agua y de los pequeños solutos insolubles en lípidos que esta transporta a través de la pared capilar. Es especialmente importante para regular la distribución de líquidos entre la sangre y los espacios intersticiales.
La cantidad de flujo masivo depende del tipo de capilar y de su grado de porosidad. Los capilares continuos tienen paredes muy estrechas y permiten un flujo masivo limitado, los capilares fenestrados contienen poros que permiten un flujo mayor y los capilares sinusoidales tienen grandes aberturas que permiten el flujo más abundante.
El agua sigue su propio gradiente de concentración por ósmosis, pero también puede ser empujada o atraída a través de la pared por las presiones hidrostática y osmótica.
Presión hidrostática y presión osmótica
El flujo masivo depende de dos presiones opuestas: la presión hidrostática y la presión osmótica, también llamada presión oncótica.
| Presión | Origen principal | Efecto sobre el líquido |
|---|---|---|
| Hidrostática | Presión de la sangre dentro del capilar | Empuja el agua y los pequeños solutos hacia los tejidos |
| Osmótica u oncótica | Proteínas plasmáticas que permanecen principalmente dentro del capilar | Atrae el agua hacia el torrente sanguíneo |
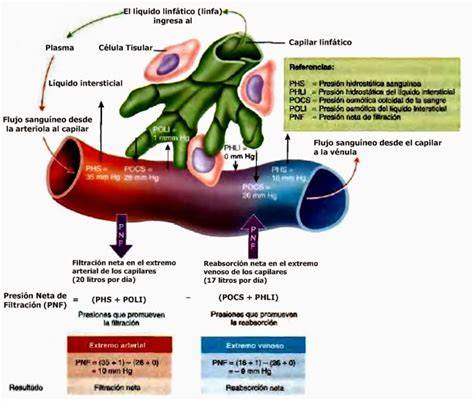
La presión hidrostática es la fuerza de empuje generada por el líquido que se encuentra dentro del capilar. Esta presión tiende a desplazar el agua y los pequeños solutos hacia los tejidos circundantes.
La presión osmótica es la fuerza de atracción generada principalmente por las proteínas plasmáticas que no pueden salir de los capilares. Estas proteínas atraen el agua hacia el interior del torrente sanguíneo.
El flujo masivo puede desplazar líquido desde la sangre hacia los tejidos o desde los tejidos hacia la sangre, dependiendo de cuál de las dos presiones sea más intensa.
Filtración
La filtración ocurre cuando el líquido sale del capilar y entra en el tejido circundante. Se produce cuando la presión del líquido dentro del capilar es superior a la presión existente en el tejido.
En el extremo arterial del lecho capilar, la presión hidrostática capilar es elevada y empuja el líquido fuera de la sangre hacia los tejidos, generando una filtración neta.
Reabsorción
La reabsorción ocurre cuando el líquido pasa desde el tejido hacia el interior del capilar. Se produce cuando la fuerza de atracción ejercida por las proteínas de la sangre es superior a la presión existente en los tejidos.
En la región media del capilar, las presiones hidrostática y osmótica pueden equilibrarse y no producir un movimiento neto de líquido. En el extremo venoso, la presión hidrostática disminuye y puede quedar por debajo de la presión osmótica coloide de la sangre, de modo que el líquido es atraído de nuevo hacia el capilar.
La explicación clásica del intercambio capilar describe una filtración neta en el extremo arterial y una reabsorción neta en el extremo venoso. Sin embargo, investigaciones más recientes indican que los capilares no reabsorben tanto líquido en su extremo venoso como sugerían los diagramas antiguos.
Muchos capilares tienden a impulsar líquido hacia el exterior a lo largo de gran parte de su recorrido, y el exceso es devuelto al torrente sanguíneo por el sistema linfático. La reabsorción continúa produciéndose, pero principalmente en situaciones especiales, como después de una pérdida de sangre, o en determinados órganos, como algunas partes del intestino y del riñón.
El sistema linfático y el equilibrio de líquidos
Los lechos capilares no funcionan solos. Para gestionar el líquido que abandona los capilares, el organismo depende de un segundo sistema de circulación: el sistema linfático.
Los vasos linfáticos son conductos delgados y de baja presión que discurren junto a los capilares sanguíneos y actúan como un sistema de drenaje. En la mayoría de los lechos capilares, sale de la sangre más líquido del que vuelve directamente a ella, por lo que una pequeña cantidad de líquido se acumula en los tejidos circundantes.
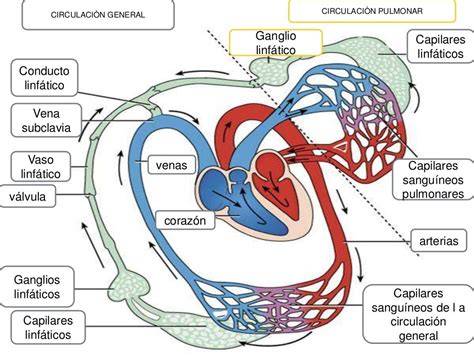
Los vasos linfáticos recogen este líquido adicional y lo devuelven al torrente sanguíneo mediante una red de vasos y ganglios. Así ayudan a impedir que el líquido se acumule en los tejidos y contribuyen a mantener el volumen normal de sangre.
Los capilares linfáticos se encuentran allí donde existen capilares sanguíneos, excepto en el sistema nervioso central y en la médula ósea. Parte del líquido que sale de los capilares sanguíneos entra en los capilares linfáticos cercanos y se convierte en linfa.
La linfa circula por vasos y ganglios linfáticos, donde es filtrada, antes de reincorporarse al torrente sanguíneo a través de las venas subclavias.
Los capilares linfáticos se unen para formar vasos linfáticos de mayor tamaño, parecidos a pequeñas venas y provistos de válvulas unidireccionales que mantienen la linfa avanzando. Cuando los músculos esqueléticos cercanos se contraen, comprimen los vasos y ayudan a impulsar la linfa por su recorrido de un solo sentido hacia el tórax.
Finalmente, toda la linfa drena hacia las venas subclavias o yugulares.
Edema y alteraciones del drenaje linfático
Cuando el sistema linfático se daña o queda bloqueado por una intervención quirúrgica, una lesión, una infección o una enfermedad genética, el líquido linfático no puede drenarse correctamente.
A medida que el líquido se acumula en los espacios tisulares, aparece una hinchazón denominada linfedema. El tratamiento del cáncer de mama, incluida la extirpación de ganglios linfáticos o la radioterapia, es una causa frecuente de este tipo de linfedema.
Los problemas venosos pueden producir una alteración similar. La insuficiencia venosa crónica, las varices y la trombosis venosa profunda aumentan la presión dentro de las venas y empujan una cantidad adicional de líquido hacia los tejidos circundantes.
Cuando el exceso de líquido supera la capacidad del sistema linfático para eliminarlo, se desarrolla edema.
Regulación del flujo en los lechos capilares
La distribución de la sangre puede modificarse según las necesidades de los distintos tejidos. Cuando una zona, como el músculo esquelético, necesita más sangre, las arterias que la abastecen se dilatan y aumenta el flujo sanguíneo hacia ese tejido.
Cuando otra zona, como el sistema digestivo, necesita menos sangre, las arterias que la irrigan se contraen. Esta constricción reduce el flujo hacia el sistema digestivo y lo redirige hacia los músculos esqueléticos que lo necesitan más.
La vasodilatación es el ensanchamiento de los vasos sanguíneos y aumenta el flujo de sangre. La vasoconstricción es el estrechamiento de los vasos sanguíneos y disminuye el flujo.
Esfínteres precapilares
En los lechos capilares mesentéricos, el flujo sanguíneo puede controlarse con precisión mediante una derivación vascular formada por una metarteriola y un canal preferencial.
La metarteriola es un vaso sanguíneo de transición que presenta características tanto de las arterias como de los capilares. Una característica fundamental de la metarteriola es la presencia de esfínteres precapilares, que son anillos de músculo liso capaces de actuar como válvulas y regular la entrada de sangre en la red capilar.
Cuando los esfínteres precapilares se contraen, estrechan las ramas de la metarteriola y desvían la sangre lejos de los capilares, dirigiéndola hacia la derivación vascular.
El canal preferencial es una continuación de la metarteriola, pero carece de músculo liso y de esfínteres precapilares. Esta diferencia estructural permite que conecte directamente con la vénula poscapilar y facilite el paso de la sangre sin la regulación proporcionada por los esfínteres.
La capacidad de la derivación vascular para controlar el flujo es esencial para mantener la homeostasis. La vasoconstricción de la metarteriola y de las arteriolas terminales reduce el flujo hacia la red capilar y lo redirige hacia otras regiones del organismo.
La contracción de los esfínteres precapilares permite una regulación más precisa, ya que la sangre puede evitar los capilares y seguir utilizando la derivación vascular.
La dilatación de las arteriolas y de los esfínteres precapilares indica una elevada demanda de sangre en esa región. Por ejemplo, un aumento de la concentración de dióxido de carbono en el mesenterio señala una actividad metabólica elevada, que requiere más sangre para suministrar oxígeno y retirar productos de desecho.
Importancia funcional del intercambio capilar
La combinación de una pared extremadamente fina, una amplia superficie de contacto y una regulación local del flujo permite que los capilares satisfagan las necesidades metabólicas de los tejidos.
La sangre oxigenada entra en los lechos capilares y allí intercambia gases y nutrientes con los tejidos. Después de liberar oxígeno y recoger dióxido de carbono y productos de desecho, la sangre desoxigenada se reúne en las vénulas y retorna al corazón.
Los capilares continuos proporcionan un intercambio controlado de moléculas pequeñas, los capilares fenestrados permiten una filtración y absorción más intensas y los capilares sinusoidales facilitan el paso de proteínas grandes y células.
La difusión, la transcitosis y el flujo masivo actúan de manera complementaria. La difusión es la principal vía para gases, nutrientes y residuos pequeños; la transcitosis permite transportar macromoléculas a través de las células endoteliales; y el flujo masivo regula el desplazamiento de agua y solutos según el equilibrio entre las presiones hidrostática y osmótica.
El sistema linfático completa este proceso al recoger el líquido que permanece en los espacios intersticiales y devolverlo a la circulación. Cuando este mecanismo de drenaje falla, el líquido se acumula y puede producir edema o linfedema.
tags: #lecho #capilar #capacidad #de #intercambio